农产品加工Farm Products Processing

荔枝病害及鉴别新技术研究进展浏览数:212次
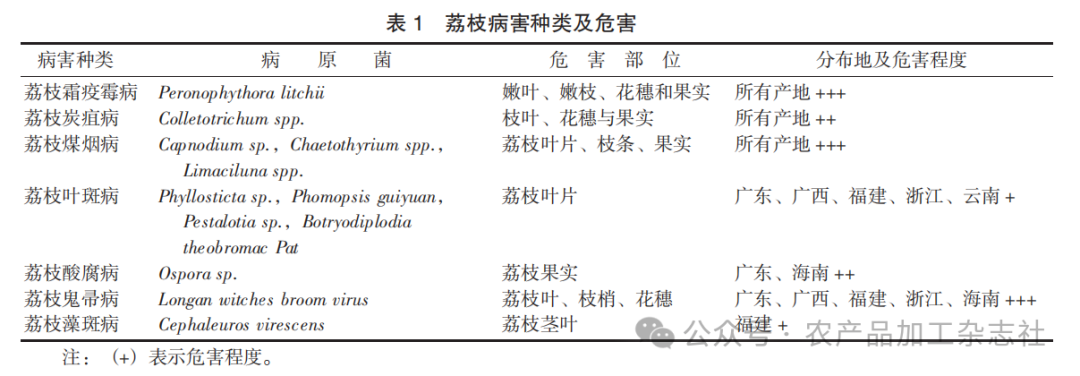 论文推荐│荔枝病害及鉴别新技术研究进展荔枝病害及鉴别新技术研究进展 作 者 刘杰凤1,*李颖1,萧允艺1,赵俊生2 作者单位 1. 广东石油化工学院生物与食品工程学院 2. 国家荔枝龙眼产业技术体系茂名综合试验站 引用格式 刘杰凤,李颖,萧允艺,等.荔枝病害及鉴别新技术研究进展[J].农产品加工,2025,(10):99-103. 基金项目 广东省普通高校重点领域专项项目(2020ZDZX1056);2023年广东省科技创新战略专项项目(2023S017085);国家荔枝龙眼产业技术体系茂名试验站(CARS-32-16)。 摘 要 荔枝生长期易受各种病害侵染,会影响荔枝产量和果实品质,高抗品种选育、及时预警和准确研判病害种类均是控制病害爆发的关键措施。概述了常见荔枝病害种类特征及其发生规律,综述了荔枝品种抗病性及病害侵染机制、生物信息学及人工智能新技术在荔枝病害鉴定上的研究进展,分析了当前存在的问题及对未来发展的前景。 关 键 词 荔枝病害;荔枝霜疫霉;多基因位点;机器视觉;深度学习 正 文 荔枝栽培过程中,侵染性病害发生种类繁多,易引起枯枝、落花落果,降低荔枝的产量与品质。荔枝果实采后褐变腐烂与采前病原菌潜伏侵染及采后腐生菌侵染有关,荔枝果实被病害侵染后,一般会使果皮的多酚氧化酶(PPO)和过氧化物酶(POD)活性增强,而超氧化物歧化酶(SOD)等抗氧化酶活性降低,从而使果皮迅速褐变果肉腐烂变质[1-2]。据统计,荔枝每年因腐烂变质而造成的损失占总产量的20%以上。近年来,南方各省荔枝产业发展迅速,随着荔枝种植品种的增多和种植面积的扩大,种植环境相应改变,给荔枝病虫害防治带来更大挑战。研究侵染机制及发生规律对病害控制显得十分重要,及时预警和准确研判病虫害种类是有效控制病虫害的关键措施。随着生物信息学和人工智能技术的发展,基于功能多基因分析鉴定方法和基于机器视觉的病虫害检测技术成为了荔枝病虫害识别研究新课题。 概述了荔枝常见病害种类特征及发生规律,对荔枝品种抗病性及其侵染机理、病害检测技术研究中取得的一些突出进展进行综述,以期为荔枝生产中病害防治及采后保鲜提供参考。 1 荔枝病害种类及其发生规律 据调查统计,荔枝生产上发生侵染性病害中有记录的有40多个种类,其中绝大多数是真菌感染,如霜疫霉病、炭疽病、酸腐病、溃疡病、叶斑病、白粉病、煤烟病、拟茎点霉病、曲霉病、焦腐病、青霉病和镰刀菌果腐病等[3-6];个别类属于病毒性的,如荔枝鬼帚病(丛枝病),一种由寄生性藻类引起的藻斑病也偶有发生[7]。不同的病害对荔枝不同器官危害性有差别,大多数病害在荔枝的生长期如叶、花及果实期都能引起感染,其中对果实危害严重的有荔枝霜疫霉菌、炭疽菌、荔枝酸腐菌。据报道,荔枝果的黑果近90%是由霜疫霉引起的,严重时造成的经济损失可高达80%,一般年份可减产10%~ 30%[8];酸腐病是导致荔枝采收后果皮腐败的主要病害[9]。 荔枝病害种类及危害见表1。
1.1 荔枝霜疫霉病 荔枝霜疫霉病是对荔枝产业影响最大的病害,学界已对该病原菌的形态学及生物学特性[10-11]、遗传特性[12-13]及侵染机制[14-15]展开了广泛研究。病原菌荔枝霜疫霉(P. litchii)属卵菌纲(Oomycetes)、霜霉目(Peronosporales)种类,已报道分离的霜疫霉菌株均为同一个单系群,不同地域间的荔枝霜疫霉菌株未见明显分化[16]。关于该菌的归属曾存在一定争议,因其有性生殖近似疫霉属而无性繁殖近似霜霉属,其孢囊梗的生长方式为多级有限生长,孢囊梗分枝与霜霉的二分叉式相近,锐角分枝是其特征,与疫霉的无限生长和霜霉的有限生长方式均有所不同,因此目前该菌的分类地位归属新建的霜疫霉科(Peronophythoraceae)霜疫霉属(Peronophythora)。近年来,基因组和转录组测序数据表明,荔枝霜疫霉具有与疫霉菌(Phytophthora)较为相近的序列特征[17-18]。 荔枝霜疫霉菌丝为白色,初期菌丝透明无隔膜,随着菌丝生长,颜色加深,产生隔膜。孢子囊无色或褐色,柠檬形,大小为(17~40)μm ×(15~24)μm,顶端有乳状突。成熟霉层呈白霜状是其特征。 该病多发生于荔枝果实转色至成熟阶段,导致烂果落果。嫩叶和果实发病时,会形成不规则褐色病斑,果实的病斑发展相当迅速,可导致全果变褐、糜烂;成熟叶片仅沿中脉出现褐色斑点,花穗受害则变褐腐烂,随后干枯脱落。若连续阴雨或空气湿度大时,病果表面长出白色的霉层;幼果感病后很快脱落,造成大量落果[19]。 1.2 荔枝炭疽病 植物病原炭疽菌是一类具有多个复合种群的真菌类,引起荔枝炭疽病的病原菌可分为尖孢炭疽(Colletotrichum acutadum)和胶孢炭疽(Colletotri-chum gloeospoiorides)2个复合群,两类菌群在形态上近似不易区分,但结合分子技术手段,如采用多基因位点系统发育分析,可实现快速鉴定。C.acutatum属子囊菌亚门,核菌纲,黑痣菌科;C.gloeo-spoiorides复合群包括38个近似的物种,其无性阶段为半知菌亚门,腔孢纲,黑盘孢科,盘孢属,而有性阶段为小丛壳菌[20]。依据新的炭疽菌种的分类方法,导致荔枝病害的胶孢炭疽菌C. gloeosporioides、果生炭疽菌C. fructicola、暹罗炭疽菌C. siamense隶属于胶孢炭疽菌复合群,其中C. gloeosporioides为优势病原菌群,国内各种植地均有发现[21]。另外,亚洲炭疽(C. asianum)、香蕉炭疽(C. musae)、卡哈瓦炭疽菌(C. kahawas subsp. kahawae)和哈锐炭疽菌(C. horri)在海南荔枝种植地域被分离。研究表明,危害叶片与果实的炭疽病病原菌种类有所差异,叶片炭疽病病原为荔枝炭疽菌(C. lotchi Trag.),而公开发表的荔枝果实炭疽病病原主要为胶孢炭疽菌(C. gloeosporioides)[22]。对常见于华南荔枝产区桂味果实麻点病(俗称“鸭头绿”)的研究表明,其病原菌为暹罗刺盘孢C. siamense[23-24]。 1.3 荔枝酸腐病 荔枝酸腐病是荔枝果腐病中的主要病害,一般发生于果实成熟期或采后贮藏期,染病果外壳硬化,暗褐色,果肉腐烂,有酸臭味汁液流出。至今发现的荔枝酸腐病原菌是半知菌亚门的丛梗孢科,地霉属白地霉(Geotrichum candidum)[25]。该菌菌落正反面均为乳白色,菌丝及分生孢子梗均较短,无色有隔。菌丝成熟后断裂成单个或成链、长筒形、末端钝圆的节孢子,节孢子大小为(5.4~16.6)μm×(4.9~ 7.6)μm,节孢子发育成熟后成为厚垣孢子,在液体培养时易生白醭。白地霉寄主范围比较广泛,因此针对荔枝酸腐病的研究仅见零星报道。酸腐病原菌容易从伤口侵入,多从蒂部开始发病,被荔枝蝽象、蛀蒂虫等危害的果实较易染病,但是低温(5 ℃)条件下病原菌生长缓慢。 荔枝酸腐病与霜疫霉病的区别是该病只危害成熟果实,且不像霜疫霉病病果可以见到明显的病斑。霉层呈粉状,而不是白霜状。 1.4 其他荔枝真菌病害 1.4.1 荔枝白粉病 由子囊菌纲粉孢属(Oidium sp.)白粉菌引起,在澳大利亚和泰国是常见病害。近年来,荔枝白粉病在我国荔枝主产地广东茂名[26]和福建漳州[27]的个别种植园相继出现。该病主要危害荔枝果实,发病初期,白粉菌在果实的龟裂片缝隙间呈稀疏的短绒毛状,随后病症逐渐发展呈白色粉层蔓延至龟裂片上,龟裂片同时变成褐色;荔枝白粉菌分生孢子椭圆形,单孢无色(23~40)μm ×(20~21)μm,单生于分生孢子梗顶端,分生孢子梗无色,由3个细胞组成。 荔枝白粉病与荔枝霜疫霉病的区别:白粉菌在荔枝果实上形成粉层,菌丝短,平铺在果皮龟裂片间缝隙内,危害严重的可扩展至果皮龟裂片上,果实成熟后果皮变褐、僵硬;而霜疫霉危害的果实,病斑多自果蒂开始发生褐色,不规则,无明显的边缘,潮湿时果皮上长有稀疏霉层,菌丝长,呈绒毡状,病斑扩展极为迅速,往往全果变褐,果肉发酸,流出褐水。2种病原菌对杀菌剂敏感性完全不同。 1.4.2 煤烟病 又称烟煤病,是一类在热带果树上普遍发生的病害,主要是由子囊菌亚门煤炱科一类具有暗色菌丝及孢子的煤烟菌引起,烟煤菌对寄主植物不直接产生危害,但是其覆盖在叶、枝、花、果等植物组织的表面,影响植物的光合作用[28]。该病发生在荔枝枝梢和果实上,病体表面会出现暗褐色小霉斑,后形成一层暗褐色至煤烟状的黑褐色霉层,病害后期会出现黑色的小粒点或者刚毛状突起物,影响荔枝的产量和品质[29]。 1.4.3 叶斑病和僵果病 引起作物叶斑病的病原菌种类很多,如曲霉属(Aspergillus)、黑孢霉属(Nigrospora)、镰刀菌属(Fusarium)等病原菌,其中链格孢菌(Alternaria Nees)是分布最广泛、使作物产量或品质损失最大的叶斑病原菌。有研究发现,引起荔枝叶斑病的病原菌为桂圆拟茎点霉(Phomopsis guiyuan),属半知菌亚门球壳孢目拟茎点霉属[30-31],但至今没有由叶斑病引发的荔枝大规模病害的报道。最近在海南荔枝园发现由Fusarium pernambucanum(伯氏镰刀菌)引起的僵果病。 1.5 荔枝常见病害发生规律 荔枝病害的发生具有明显的时间节律,且与荔枝物候期有显著的相关性。霉菌菌丝生长及孢子萌发的适宜条件是温度25~30 ℃,pH值4~7,3—9月份是荔枝主要病害集中发生时期。荔枝霜疫霉菌丝在10~30 ℃均可生长,该病害在25 ℃左右的多雨季节容易爆发,如广东多发生于4—5 月份,广西、四川和云南在5—8月份多发,海南省的气候不适宜荔枝霜疫霉的生长,至今没有大规模爆发的报道。温度、露时及其交互作用可显著影响荔枝霜疫霉孢子囊的萌发及寄主发病的严重度[32]。荔枝叶斑病在病害高发期3—9月份均有发生,在干旱地区的果园,荔枝炭疽病发生尤为突出,但白粉菌对干旱环境的适应力较强;在多雨潮湿的地区,荔枝霜疫霉病、荔枝叶斑病危害程度重。在6—7月份果实成熟期,以荔枝霜疫霉病、荔枝炭疽病、荔枝酸腐病为主。 2 荔枝品种的抗病性及侵染机理 2.1 不同荔枝品种的抗病性 我国的荔枝种质资源丰富,据国家荔枝种质资源圃收集到的荔枝种质资源已超过600份,经测定的品种累计有170多个。为了改良荔枝品种结构,对荔枝品种的抗病性研究正在逐步展开,评价方法、试验菌致病性、接种方式等的不同,得到的荔枝品种抗性结论会有较大的差别,比较有说服力的抗病性评价体系是采用发病率和病情指数相结合的抗性评价方法[33]。赵冉[34]通过2种评价方法相结合的评价体系对140个荔枝品种进行霜疫霉抗性鉴定,得出“义桥蜜荔”“佳圆蜜荔”“鹅蛋荔”为免疫品种,但陶挺燕[35]的测定结果显示“鹅蛋荔”为高感品种。综观田园观测调查及离体鉴定、果实及叶片抗性测定的报道[36-37],目前规模种植的品种中,糯米糍系、蜜荔系、“大丁香”这3个品系抗病性好,而“白糖罂”“妃子笑”“桂味”“紫娘喜”“怀枝”为高感品种,“黑叶”“尚书怀”“红荔”和“水晶球”等对荔枝霜疫霉的抗性属于感染品种。在茂名和漳州2个白粉病发生地的调查数据表明,“黑叶”发病率最重,果穗发病率为94.5%;“白蜡”发生最轻,果穗发病率仅为5.6%。桂味对炭疽菌的敏感性较高,但果农经验认为感染炭疽病的“鸭头绿”更清甜,其作用机理值得研究。随着叶龄的增大,革质化增厚,荔枝叶片对荔枝霜疫病的抗性增强。 2.2 荔枝抗病机理研究 目前,荔枝抗病机理相关研究主要是针对荔枝霜疫霉的侵染性展开。已有10多个荔枝霜疫霉功能基因的研究报道,如诱导植物细胞死亡的P1NLP 蛋白家族和RXLR 效应分子,参与侵染阶段转录上调的致病因子PlHK1、PlHK2、PlRR1,对有性和无性分化具有特异性调控作用的PlMAPK10、PlM90等[8]。上述效应分子与植物在蛋白水平的互作将是今后深入研究荔枝和霜疫霉相互作用的重点之一。 植物受到生物胁迫与非生物胁迫时,其苯丙氨酸解氨酶(PAL)活性一般会增强,PAL 通常视为植物抗性的生理标记。苯丙烷代谢通路与荔枝对霜疫霉侵染抗性的关系研究表明,总酚、类黄酮、花色素苷和香豆素等苯丙烷类代谢中的次生代谢产物指标与霜疫霉病情指数显著相关[14]。荔枝果实受病菌侵染后,果皮内酶活性变化显著,强致病性菌株引起的酶活性变化强度尤其强于弱致病力菌株和对照处理的果皮内酶活性变化[38-39]。另有研究表明,荔枝抗病性与果皮细胞的超微结构相关,果皮外表面排列较整齐、紧密,且微裂口较小,细胞膜透性低的品种抗病性好[40]。荔枝霜疫霉可通过孢子囊及游动孢子从荔枝果皮的嵴点裂缝处与皮孔处侵入,并在果皮内扩展,荔枝的内果皮。 3 荔枝病害的鉴别新方法研究进展 准确且快速地预测判断病害类型是有效防治荔枝病害的关键,代谢组学及多功能基因位点等分子水平的检测技术得到应用。基于图像的农作物病虫害自动诊断技术研究正在兴起,有研究正在发展针对荔枝病虫害检测的机器视觉深度学习算法,尤其是基于卷积神经网络算法的发展和优化,以模型轻量化和快速收敛为目的,通过引入特征融合和注意力、迁移学习等方法,省去人工特征筛选的过程,提高荔枝病虫害分类准确率和效率。 王卫星等人[41]使用新特征融合方法和注意力机制CBAM提出的YOLO v4-GCF荔枝病虫害检测模型,对煤烟病、炭疽病、藻斑病、毛毡病和叶瘿蚊这5种病虫害目标在训练集、验证集和测试集上的平均精度分别为95.31%,90.42%和89.76%,模型内存占用量比改进前的YOLO v4模型缩小84%,检测速度提升38%,平均精度比常用模型YOLO v4-tiny高18%。ShuffleNetV2是一种较优的轻量型卷积神经网,彭红星等人[42]在ShuffleNetV2模型中引入注意力机制SimAM,强化荔枝病虫害特征并抑制背景特征;采用激活函数Hardswish减少网络模型参数量,使网络更加轻量化;在改进的模型上采用迁移学习方法,增强模型识别不同的荔枝病虫害种类的适应性。与原始ShuffleNetV2模型相比,提出的荔枝病虫害识别模型SHTNet的准确率、精确率、召回率均有明显提高,综合性能明显优于ResNet34,ResNeXt50和Mo- bileNetV3-large模型。谢家兴等人[43]通过数据增强操作和混合空洞卷积,嵌入轻量型通道注意力模块ECA,对ShuffleNetV2模型进行改进,在5类荔枝病虫害图像(毛毡病、炭疽病、烟煤病、叶缨蚊和藻斑病)中达到了99.04%的识别准确率,比原网络ShuffleNet V2高出2.55%。相较于经典网络AlexNet、ResNet- 18、DenseNet和MobileNetV2等,改进模型不仅有着更高的识别准确率,且改进后模型参数量仅0.059×10⁶为原模型的4.92%,浮点运算量仅为0.183×10⁹。采用卷积神经网络算法对荔枝病虫害图像进行训练学习,形成病虫害图像识别引擎,构建提供病虫害自动化识别服务个性化荔枝基地病虫害预测预警模型也取得了较大进展[44]。 对不同种类的病虫害,可采用不同的方法进行特征提取,而荔枝的病害通常体现在植株的叶片或者果实上的颜色变化上,通常会用颜色特征、纹理和轮廓特征来进行识别。因此,有研究提出基于多特征融合的荔枝病虫害识别思路,试验结果表明识别精度达到95%以上[45]。改进相关算法,针对不同种类病虫害设计合适的检测系统实现实时检测、提高分类准确率是荔枝病虫害智能识别的关键内容。 4 结语 病害是限制荔枝产业发展的主要根源之一,荔枝病害种类较多,其中危害最大的是霜疫霉病,潜伏在果实的病害对采后贮藏保鲜带来很大困难,如酸腐病对采后果实危害最大。控制荔枝病害首先是要通过农业农艺预警防控,筛选抗性品种,然后是找到高效、有针对性的治理方法进行绿色防治。我国对荔枝病害侵染机理研究已相当活跃,但主要是针对荔枝霜疫霉病开展,引发荔枝病害的病原菌主要是霉菌类真菌,而这些霉菌菌丝体一般为白色,最终都会引起减产和果实腐烂,人工经验判断易错判。随着生物信息学的发展,基于基因组学的分子鉴定,如多基因位点系统发育分析被用于荔枝病害的分子鉴定;得益于人工智能技术的发展,基于图像的农作物病虫害自动诊断技术正在兴起,以提高准确率和效率、轻便化的荔枝病害识别算法成为研究热点,且取得了一定成效。高品质精准管控技术和致腐病原菌绿色防控技术仍是荔枝病害防治研发方向。 参考文献: [1]KAMILA K. The role of phenolic compounds in plant resistance[J]. Biotechnology and Food Sciences,2016,80(2):97-108. [2]MINAEVAA O M,AKIMOVAA E E,TERESHCHENKOA N N,et al. Effect of pseudomonas bacteria on peroxidase activity in wheat plants when infected with bipolaris sorok-iniana[J]. Research Papersp,2018,65(5):717-715. [3]王继栋,朱西儒. 荔枝采后病害及防治技术研究进展[J]. 果树学报,2002,19(2):128-131. [4]王伟博,李松刚,胡美姣,等. 无核荔枝僵果病的病菌鉴定、入侵途径及快速检测技术研究[J/OL]. 热带作物学报:1-8.[2024-03-26]. http://kns.cnki.net/kcms/detail/46.1019.S.20230320.1239.003.html. [5]张新春,高兆银,肖茜,等. 中国荔枝病原真菌分离和鉴定[J]. 广东农业科学,2014,41(16):81-84. [6]符光执. 海南荔枝病虫害的绿色防控[J]. 现代化农业,2023(4):20-22. [7]宋云连,罗心平,章勇,等. 云南荔枝主要病虫害发生规律[J]. 中国农学通报,2022,38(28):114-122. [8]孔广辉,冯迪南,李雯,等. 荔枝霜疫病的研究进展[J]. 果树学报,2021,38(4):603-612. [9]黄国林,刘月廉,朱艳秋. 荔枝酸腐病病原菌的形态学及分子生物学鉴定[J]. 黑龙江农业科学,2021(2):66-69. [10]蔡学清,林娜,陈炜,等. 荔枝霜疫霉的生物学特性[J]. 热带作物学报,2009,30(9):1226-1231. [11]陶挺燕,何凡,范鸿雁,等. 荔枝霜疫霉病病原菌生物学特性研究[J]. 中国南方果树,2010,39(3):44-46. [12]王荣波,陈姝樽,郭朦朦,等. 荔枝霜疫霉自噬相关基因的鉴定与表达分析[J]. 植物病理学报,2022,52(3):310-320. [13]司徒俊键. 荔枝霜疫霉侵染过程转录组分析与RXLR效应蛋白的筛选[D]. 广州:华南农业大学,2020. [14]陈浩,孙进华,王树军,等. 霜疫霉侵染对不同荔枝品种果皮苯丙烷类代谢的影响[J]. 热带作物学报,2021, 42(6):1694-1699. [15]张荣,徐丹丹,姜焰鸣,等. 温度和露时对荔枝霜疫霉侵染发病的影响[J]. 华南农业大学学报,2020,41(2):88-94. [16]凌金锋. 荔枝病果相关的四属菌物鉴定及分子系统发育分析[D]. 广州:华南农业大学,2019. [17]YE W W,WANG Y,SHEN D Y,et al. Sequencing of the litchi downy blight pathogen reveals it is a Phytophthora species with downy mildew-like characteristics[J]. Mole-cular Plant-Microbe Interactions,2016,29(7):573-583. [18]SUN J H,GAO Z Y,ZHANG X C,et al. Transcriptome analysis of Phytophthora litchii reveals pathogenicity arsenals and confirms taxonomic status[J]. PLoS One,2017, 12(6):178245-178252. [19]郑重禄. 荔枝霜疫霉病菌及其生物学特性研究概述[J].中国南方果树,2015,44(6):157-168,172. [20]ERIKA P M,JUAN C H,JAIRO A O,et al. Identification of Colletotrichum species causing anthracnose on Tahiti lime,tree tomato and mango[J]. Agronomía Colombiana,2009,27(2):211-218. [21]李少卡,赵亚,王祥和,等. 海南荔枝炭疽病病原菌鉴定及遗传多样性分析[J]. 农业生物技术学报,2021, 29(4):673-687. [22]陈瑞琴. 荔枝炭疽菌鉴定、检测及遗传多样性研究[D]. 海口:海南大学,2012. [24]凌金锋,彭埃天,姜子德,等. 荔枝果实麻点病与几种易混淆症状的识别、成因及防治措施[J]. 植物保护,2022,48(3):216-224. [25]蔡学清,林通,谢玲平,等. 福建荔枝酸腐菌的生物学特性研究[J]. 热带作物学报,2009,30(12):1858-1864. [26]张荣,陈厚彬,何平,等. 荔枝白粉病的发生与防治[J]. 果树学报,2010,27(4):641-644,666. [27]汪淑燕,刘国坤,许文耀. 福建省荔枝白粉病的发生与防治[J]. 东南园艺,2014(6):122-124. [28]杨慧. 云南地区烟煤菌形态学与分子系统学的研究[D]. 北京:中国林业科学研究院,2014. [29]肖倩莼,陈永强,余卓桐,等. 主要热带果树煤烟病的为害性及病原菌种类研究[J]. 热带作物学报,2000(1):25-30. [30]宋云连,罗心平,章勇,等. 云南荔枝主要病虫害发生规律[J]. 中国农学通报,2022,38(28):114-122. [31]郭建辉. 我国荔枝、龙眼病害名录[J]. 亚热带植物科学,2002(S1):48-50,56. [32]张荣,徐丹丹,姜焰鸣,等. 温度和露时对荔枝霜疫霉侵染发病的影响[J]. 华南农业大学学报,2020,41(2):88-94. [33]李芳,张蕾,林祺英,等. 荔枝炭疽病室内抗病评价体系的建立[J]. 植物病理学报,2023,53(3):455-462. [34]赵冉. 荔枝品种对荔枝霜疫病的抗病性研究[D]. 广州:华南农业大学,2020. [35]陶挺燕. 海南荔枝种质资源对荔枝霜疫霉病抗性鉴定及霜疫霉病防治药效筛选[D]. 海口:海南大学,2010. [36]曹璐璐,孙进华,王家保. 荔枝果实对霜疫霉侵染抗性评价体系建立及初步应用[J]. 热带作物学报,2017, 38(1):126-130. [37]PANDEY V P,BHAGAT P K,PRAJAPATI R,et al. A defense associated peroxidase from lemon having dye decolorizing ability and offering resistance to heat,heavy metals and organic solvents[J]. Biochemistry & Analytical Biochemistry,2016(2):1-10. [38]张新春,彭元科,王家保. 不同致病力炭疽菌接种后荔枝果皮相关酶活性变化[J]. 中国农学通报,2015,31(7):169-174. [39]李芳,曹璐璐,孙进华,等. 霜疫霉诱导的荔枝果皮几丁质酶活性及其基因表达分析[J]. 分子植物育种,2020, 18(11):3509-3516. [40]朱若鑫. 福建主栽荔枝品种的果实对霜疫霉的抗病性及机理初探[D]. 福州:福建农林大学,2011. [41]王卫星,刘泽乾,高鹏,等. 基于改进YOLOv4的荔枝病虫害检测模型[J]. 农业机械学报,2023,54(5):227-235. [42]彭红星,何慧君,高宗梅,等. 基于改进ShuffleNetV2模型的荔枝病虫害识别方法[J]. 农业机械学报,2022, 53(12):290-300. [43]谢家兴,陈斌瀚,彭家骏,等. 基于改进ShuffleNetV2的荔枝叶片病虫害图像识别[J]. 果树学报,2023,40(5):1024-1035. [44]欧善国,张桂香,彭晓丹. 荔枝病虫害图像识别技术研究和应用[J]. 农业工程,2020(11):29-35. [45]邱文杰. 基于关系型知识蒸馏的植物病害识别及模型精简研究[D]. 南宁:广西大学,2022. ◇
|

